
BIO – Medicina Costruzione Sociale nella Post-Modernità – Educational Papers • Anno IV • Numero 14 • Giugno 2015
Scritto in collaborazione con Eugenia D’Alterio – biologa
La cosiddetta natura umana
L’intenzione del progetto editoriale “BIO Educational Papers Medicina Costruzione Sociale nella Post- Modernità Retroscena” è quella di fornire strumenti culturali adattivi che ci consentano di cogliere le realtà in termini postmoderni, ovvero in termini di ontologie (cioè di convinzioni) costruite da noi, gruppi sociali, nel tentativo di comprendere il mondo che ci capita (o in cui capitiamo) e di attribuirgli un senso, per cui si continua ad insistere sulla premessa che qualunque riflessione riguardi le realtà sociali, compresa quella della medicina, richieda come punto di partenza e di riferimento una realistica comprensione della condizione umana, compito estremamente difficile.
In effetti, pur se possiamo convenire che la natura umana si palesi attraverso le nostre azioni quotidiane, un consenso al riguardo rimane elusivo. Per questa persistente incertezza è plausibile che vi sia una ragione umana emotiva. Infatti, se la “natura umana” ci venisse esposta senza i veli metafisici, come ci riterremmo? Una specie animale della fauna globale.
Sono molti i gruppi sociali, compresi gli accademici, che preferiscono conservare la natura umana, almeno parzialmente, nell’oscurità. La natura umana viene dipinta come animalesca nell’arena dei discorsi pubblici. La sua percezione non solo è distorta dagli schemi cognitivi sociali ma anche dalle idiosincrasie e aspettative personali. Le scuole di economia la definiscono secondo i propri interessi teorici e i teologi l’affidano in parte a Dio e in parte al male. Certo è che le ideologie politiche, dall’anarchismo al fascismo, l’hanno definita in funzione dei propri interessi.
La possibilità di stabilire cosa sia la natura umana fu negata durante il passato secolo dalla maggior parte delle scuole di scienze sociali. Esse hanno asserito, unilateralmente, che tutte le condotte sociali sono ascritte e che la cultura è il prodotto di un tramandare da una generazione all’altra. I leader religiosi conservatori, in contrasto, hanno sostenuto e sostengono la credenza che la natura umana sia una proprietà immutabile, concessa da un Dio creatore, che va spiegata alle masse mediante coloro i quali hanno il privilegio di interpretare la volontà divina.
Tuttavia, ampie documentazioni, ricavabili da molteplici branche del sapere scientifico e umanistico, consentono un’ipotesi diversa circa la natura umana. Ma prima di svilupparla, si segnala quanto segue:
1) La natura umana non corrisponde propriamente ai geni umani. I geni prescrivono le regole di sviluppo del nostro corpo ma, poi, in ambito socio ambientale e in commistione con esso, si verificano, evolutivamente, cambiamenti nell’espressioni dei geni stessi, ereditabili nella discendenza, che si traducono nelle cosiddette regole epigenetiche che, possiamo considerare, rappresentino la vera natura umana.
2) Nemmeno gli universali della cultura1, definiti dagli antropologi, costituiscono propriamente la natura umana2.
In ogni modo, se il codice genetico è “troppo vicino” alla sua base molecolare e gli universali culturali troppo distanti dal codice genetico stesso, secondo E. O. Wilson3, il miglior luogo per cercare la consistenza della natura umana è nel mezzo, ossia nelle regole di sviluppo prescritte dai geni attraverso le quali gli universali della cultura si creano e attuano cambiamenti nell’espressività dei geni stessi.
In questa ottica, la natura umana si produce dalle regolarità ereditarie (sequenza invariata del DNA) ma sono le variazioni nell’espressività dei geni stessi a definirla, soprattutto per quanto riguarda lo sviluppo culturale comportamentale comune alla nostra specie.
Le regole epigenetiche
Queste regolarità sono dettate, secondo E.O. Wilson, dalle “regole epigenetiche”, le quali si sono evolute mediante l’interazione evolutiva genetica e culturale – ambientale, interazione che ha richiesto un lunghissimo periodo della nostra storia ancestrale. Dunque, le regole epigenetiche non riguardano cambiamenti nel DNA ma nella maniera in cui i geni vengono espressi. Queste regole esprimono le modalità con cui percepiamo il mondo circostante, il codice simbolico con cui rappresentiamo il mondo, le opzioni che noi, umani, ci riserviamo, autonomamente, e le soluzioni che troviamo più facili e pregnanti da attuare4.
L’influenza delle regole epigenetiche si manifesta attraverso un’ampia estensione di categorie comportamentali e sensoriali5 come la modalità con cui noi percepiamo e classifichiamo linguisticamente i colori o l’istinto a valutare l’estetica dell’arte figurativa, secondo forme astratte elementari e il suo grado di complessità. O, ancora, le regole epigenetiche influenzano la nostra scelta su quali individui troviamo sessualmente più attraenti. Inoltre, ci conducono, in modo differenziato, ad acquisire paure e fobie riguardo i pericoli nell’ambiente, come l’acrofobia (o paura delle altezze) e la herpetofobia (o paura dei rettili), a comunicare con certe mimiche facciali e con determinate forme di linguaggio corporeo, ad essere piacevoli con i bambini, a contrarre matrimonio e via dicendo6. La maggior parte delle regole epigenetiche risalgono a milioni di anni nello sviluppo dei nostri antenati mammiferi7, altre, come gli stadi dello sviluppo linguistico, risaligono a centinaia di migliaia di anni, mentre lo sviluppo di una tolleranza degli adulti al lattosio, che ha portato ad una cultura lattiero-casearia, risale soltanto ad alcune migliaia di anni fa (circa 10.000)8 quando una parte dell’umanità abbandonò la vecchia economia di caccia per quella agricola pastorale.
Come è chiaro dal prefisso “epi- (sopra, su) nel termine “epigenetica”, le regole epigenetiche delle manifestazioni fisiologiche non sono cablate nei geni (ossia non sono geneticamente innate) ma neanche sfuggono ad un controllo cosciente, come gli automatismi del battito cardiaco e della respirazione. Mentre i riflessi sono innati, come i battiti di ciglia e il riflesso patellare. Il più complesso dei riflessi è la reazione di trasalimento: se, all’improvviso, ci si avvicina di soppiatto una persona da dietro e contemporaneamente si percepisce un rumore forte, un urlo o uno schianto, ognuno di noi, oggetto di tale azione, in una frazione di secondo, prima ancora che la corteccia frontale possa elaborare una risposta cosciente, rilasserà i muscoli, chiuderà gli occhi, aprirà la bocca, chinerà la testa in avanti e piegherà leggermente le ginocchia. Sia nella natura selvaggia che nella civiltà, il riflesso di trasalimento, immediato e non cosciente, ci prepara ad affrontare una possibile collisione o colpo. Se nel passato la nostra vita poteva essere risparmiata dall’attacco di un nemico o di un predatore, ancora oggi il riflesso di trasalimento è un ottimo deterrente di eventuali pericoli. Il riflesso di trasalimento però è rigidamente prescritto dai geni, per cui esso non fa parte della natura umana nei termini in cui noi intuitivamente la percepiamo poiché esso è eseguito interamente fuori dal controllo del comportamento conscio.
Da una prospettiva evoluzionista, in specifico, secondo l’ottica di Wilson9, i comportamenti dettati dalle regole epigenetiche non sono innati come i riflessi ma costituiscono il nucleo di ciò che si dovrebbe intendere come natura umana. I comportamenti dettati dalle regole epigenetiche, in questa interpretazione circa la natura umana, sarebbero “appresi”, e il processo sarebbe quello che gli psicologi chiamano apprendimento “preparato” [PREPARED]. Così, siamo predisposti ad imparare e, in tal modo, a rinforzare un’opzione rispetto un’altra e di contro “non-preparati” a fare scelte alternative o perfino ad evitarle in tutti i modi. Per esempio, noi siamo predisposti ad imparare prestissimo ad aver paura dei serpenti, fino al punto di averne fobia e, tuttavia, non siamo preparati a trattare con lo stesso grado di repulsione altri rettili come le tartarughe e le lucertole. Attraverso l’apprendimento preparato noi siamo propensi a trovare bellezza in un paesaggio solcato da un ruscello e di contro a reagire spaventati all’interno di una foresta oscura. Tali reazioni, in effetti, ci sembrano “naturali” ma devono essere apprese, e il punto è proprio questo.
Co-evoluzione Geni-Cultura
In questa prospettiva teoretica di interpretazione della natura umana, la domanda a questo punto è: Come si sono evolute tali regole epigenetiche dell’apprendimento preparato ossia della cultura?
Negli anni 70 del secolo scorso il dibattito, tra evoluzione / geni / ambiente / cultura, era intenso. Parte del problema che sussisteva per l’evoluzionismo era spiegare il modo in cui l’evoluzione dei geni incideva nell’evoluzione della cultura. Quest’interazione rappresentava una sfida teoretica eccezionalmente difficile.
Alla fine degli anni 70 Edward O. Wilson e il fisico teoretico Charles J. Lumsden proposero che il tutto poteva essere chiarito se considerato come due questioni ancore irrisolte. La prima, era quella di identificare la base istintuale, quindi, non culturale, della natura umana. La seconda era la relazione causale fra l’evoluzione dei geni e l’evoluzione della cultura, ovverosia la “co-evoluzione geni-cultura”, come Wilson & Lumsden chiamarono questa relazione10. Da tempo era noto che molte proprietà del comportamento sociale umano erano influenzate dall’ereditarietà, sia per la specie nel suo complesso sia per le differenze fra i membri di una stessa popolazione. Era già anche noto che alcune proprietà considerate innate della natura umana dovevano, invece, essersi evolute come adattamenti. Queste conoscenze permisero a Lumsden & Wilson di ipotizzare che la chiave alla soluzione fosse la preparazione o contropreparazione nel modo in cui le persone apprendono la cultura (ovvero nel modo di acculturarsi)11.
Altri ricercatori accolsero il concetto di co-evoluzione geni-cultura12 pur se enfatizzando maggiormente l’evoluzione culturale. Questi ricercatori vedevano nell’evoluzione genetica la forza che ha dato origine all’attitudine alla cultura e la rappresentavano come uno dei due binari di una ferrovia che corre, più o meno separatamente, accanto al binario dell’evoluzione culturale13. Questi ricercatori prestavano, però, scarsa attenzione alle interazioni, alle regole epigenetiche o alle componenti genetiche attraverso le quali avviene la co-evoluzione14.
D’acchito potrebbe sembrare che l’evoluzione culturale tenda ad inibire o perfino a invertire l’evoluzione genetica. L’utilizzo dei fuochi di bivacco, di accampamenti e di un abbigliamento protettivo consentì agli umani di sopravvivere e riprodursi in parti del mondo dove altrimenti sarebbe stato impossibile superare le stagioni ostili. Di più, tecniche progredite di caccia e l’agricoltura permisero alle popolazioni di radicarsi in habitat dove avrebbero normalmente trovato la morte per fame. In effetti, seguendo questo ragionamento, risulta ragionevole chiedersi – Perché essere governati dai geni se i cambiamenti culturali potevano ottenere lo stesso risultato in tempi più brevi?
In effetti, in questa prospettiva, l’evoluzione culturale, indubbiamente, tende a soffocare l’evoluzione genetica. Pur tuttavia, ci sono state nuove sfide e opportunità abbondanti nei molti habitat terrestri che poterono essere affrontate, o almeno fronteggiate, più efficacemente di un cambiamento genetico guidato dalla selezione naturale. L’esplosione di nuove mutazioni che si verificò dopo il grande esodo dall’Africa, circa 60.000 anni orsono, creò un ampio numero di nuovi geni potenzialmente adattivi, processi avvenuti, sorprendentemente, in tutte le popolazioni umane e nei loro diversi percorsi di colonizzazione del pianeta.
Tolleranza al lattosio negli adulti
L’esempio classico della co-evoluzione geni – cultura, che si è verificata da millenni, è lo sviluppo della tolleranza al lattosio negli adulti. La produzione della lattasi, l’enzima che trasforma il lattosio in zuccheri assimilabili (idrolisi enzimatica del lattosio in glucosio e galattosio), era presente solo nei neonati. Questo comportava che quando il bambino era svezzato dal latte materno, il suo organismo sospendeva la produzione di lattasi. Ma, con lo sviluppo della pastorizia, verificatasi da 9.000 a 3.000 anni fa in modo diverso e indipendente in Europa settentrionale e in Africa orientale, si verificarono mutazioni nei geni che favorirono la produzione di lattasi nella vita adulta, prerogativa che si sarebbe poi diffusa anche per via culturale, consentendo il consumo continuativo di latte. Il vantaggio per la sopravvivenza e la riproduzione derivante dall’utilizzo del latte e dei prodotti lattiero-caseari si sarebbe rivelato enorme. In effetti, bestiame da latte, come mucche, capre e cammelli, si contavano e si contano tutt’ora tra le fonti dell’alimentazione umana più produttive. Quattro mutazioni indipendenti, che prolungano la produzione di lattasi, sono state identificate dai genetisti, una in Europa e tre in Africa15.
La tolleranza al lattosio è allora un esempio di ciò che gli ecologisti e i ricercatori sull’evoluzione umana chiamano “NICHE CONSTRUCTION”16 [costruzione di nicchia]. Nel caso della co-evoluzione geni-cultura verificatasi con la tolleranza al lattosio, la nicchia si sarebbe realizzata per includere la pastorizia come nuova importante fonte e riserva di cibo. Geni mutanti sono stati disponibili in frequenze molto basse ma rapidamente rimpiazzati da altre varianti. Inoltre, questi geni mutati sono stati lo strumento principale con cui avvengono cambiamenti fisiologici, in questo caso nel sistema digerente17 18.
Anche più recentemente, un gran numero di altri processi co-evolutivi è stato documentato da antropologi e psicologi. Questi processi co-evolutivi sono universali nell’uomo “moderno” e, in alcuni casi, l’origine è addirittura precedente la comparsa dell’Homo sapiens moderno e anche precedente alla separazione evolutiva uomo – scimpanzé che è avvenuta più di sei milioni di anni fa. Operando al livello della cognizione e delle emozioni, il loro effetto sull’evoluzione del linguaggio e della cultura è stato ampio e profondo. I cambiamenti co-evolutivi, che intrecciano geni e cultura, costituiscono in gran parte quello che intuitivamente chiamiamo “natura umana”19.
L’effetto Westermarck e la proibizione all’incesto
Uno dei più studiati esempi di questi processi co-evolutivi è quello relativo la proibizione all’incesto. Il tabù incesto può essere considerato un universale. Le società studiate dagli antropologi dimostrano come nel passato ed ancora oggi alcune hanno favorito e favoriscono il matrimonio tra cugini di primo grado vietandolo tra fratelli e fratellastri. Pochissime società in epoca storica hanno istituzionalizzato l’incesto tra fratello e sorella per alcuni loro membri. L’elenco include gli Inca, i Hawaiani, alcuni popoli Thai, gli antichi Egizi, i Monomotapa dello Zimbabwe, gli Ankale (India), i Buganda e i Bunyoro dell’Uganda, i Nyanza del Congo, i Zandle e i Shilluk del Sudan e i Dahomean del Dahomey. In tutti questi casi, la pratica era ritualizzata e circoscritta alla famiglia regnante o ad altri gruppi di potere. Il potere politico era trasmesso attraverso la linea maschile e ammetteva la pratica della poligamia, permettendo, in questo modo, ai maschi di generare prole senza i rischi genetici dell’incesto20.
Al di fuori di queste antropologie, l’incesto fratello – sorella è rigorosamente vietato. La repulsione contro questa pratica è ampiamente e socialmente rinforzata da quasi tutte le culture attraverso il tabù e la legge. Il rischio di avere prole disabile per via dell’incesto è abbastanza conosciuto nell’umanità21. In media, ogni individuo porta sulle sue 23 coppie di cromosomi almeno due siti per lo stesso gene, detti alleli, di cui solitamente uno recessivo e possibile portatore di tare genetiche ereditarie e uno dominante, sano, che si esprime. Il gene recessivo è, quindi, presente, solitamente, su un unico cromosoma della coppia cromosomica e il suo omologo sull’altro è solitamente normale e dominante. Quando entrambi gli alleli veicolano il gene difettoso, la persona portatrice svilupperà la carenza ereditaria. Se invece, come capita, uno dei due geni è normale e dominante, esso solo si esprimerà e l’individuo svilupperà quelle caratteristiche normalmente, mentre un gene difettoso e nascosto, in presenza del suo omologo dominante, si chiamerà “recessivo”.
Da quanto detto sui geni difettosi – recessivi e dominanti possiamo intendere le conseguenze deleterie di una procreazione tra consanguinei che aumenterebbe, esponenzialmente, la possibilità di espressione di coppie di alleli difettosi per lo stesso gene e già presenti nel patrimonio genetico familiare. Così, l’incesto (rapporti tra consanguinei), che è un fenomeno presente non solo negli umani ma anche negli animali risulterebbe dannoso per la prole. Quasi tutte le specie esposte a una modesta o grave depressione da inincrocio [“depressione endogamica”]22 utilizzano qualche metodo biologicamente programmato per evitare l’incesto23. Tra tutte le diciannove specie i cui modelli di accoppiamento sono stati studiati, i giovani individui tendono a attuare l’equivalente dell’esogamia umana. Prima di giungere all’età adulta, lasciano il gruppo in cui sono nati e si aggregano ad un altro. Tra i lemuri del Madagascar e nella maggior parte delle specie di scimmie con coda [MONKEY], sia nel Nuovo che nel Vecchio Mondo, è il maschio ad emigrare. Tra le scimmie colobo rosse [PILIOCOLUBUS], nei babbuini hamadryas, nei gorilla e negli scimpanzé dell’Africa, è la femmina, invece, a lasciare il branco. Tra gli Aloutta (o scimmie urlatrici) di Centro e Sud America, tutti e due i sessi si separano. I giovani migranti di queste diverse specie di primati non vengono cacciati dal gruppo per una condotta aggressiva da parte degli adulti, il loro allontanamento sembra del tutto volontario24.
Lo stesso fenomeno anche per gli umani è detto esogamia25, per cui la coppia, solitamente, si sceglie tra non familiari o parenti prossimi. Anche in popolazioni meno civilizzate si assiste ancora che le donne sono date in matrimonio tra tribù diverse. Le conseguenze positive degli accoppiamenti esogamici nelle culture delle popolazioni sono molteplici e sono state studiate dettagliatamente dagli antropologi. Per una spiegazione dell’origine dell’esogamia come un istinto di alto valore genetico, tuttavia, basterebbe guardare l’orientamento attuato da altre specie.
Quale che sia la sua origine evolutiva ultima e comunque come essa possa determinare l’esito riproduttivo, la migrazione dei giovani primati prima di raggiungere la piena maturità sessuale riduce il potenziale di rischi della consanguineità o dell’inincrocio. Ma la barriera contro la consanguineità o l’inincrocio è rinforzata da una seconda linea di resistenza e questa è quella di evitare l’attività sessuale tra individui strettamente imparentati che rimangono nel loro gruppo natale26. In tutte le specie sociali di primati non umani di cui lo sviluppo sessuale è stato accuratamente studiato, includendo gli uistitì pigmei e i leontocebi del Sud America, i macachi asiatici, i babbuini e gli scimpanzé, sia i maschi che le femmine adulti mostrano il cosiddetto “Effetto Westermarck”, ossia respingono sessualmente gli individui a cui sono legati per parentela. Madri e figli non copulano quasi mai e fratelli e sorelle cresciuti insieme si accoppiano molto più raramente di quegli individui cresciuti distanti o imparentati lontanamenteefn_note]Ibidem p. 201.[/efn_note] 27.
Questo comportamento fu scoperto negli umani dall’antropologo Edward A. Westermarck e riportato nel suo lavoro, del 1891, “The History of Human Marriage”28. L’esistenza del fenomeno aveva nel frattempo guadagnato un crescente interesse di molti studiosi. Forse il più persuasivo degli studi fu quello circa i “matrimoni tra adolescenti” ossia quello del “matrimonio precoce” in Taiwan condotto da Arthur P. Wolf29. I matrimoni precoci, un tempo assai diffusi nella Cina meridionale, sono matrimoni in cui le famiglie adottano bambine non imparentate, le allevano con i figli naturali in un’ordinaria relazione fratello-sorella e, successivamente, le accasano con i figli. Il motivo di tale pratica sembra essere quello di garantire compagne ai figli quando uno squilibrio nel rapporto fra il numero dei maschi e quello delle femmine (per la prevalenza, a volte, dei maschi di una data età in una popolazione) e una prosperità economica si combinano per creare un mercato matrimoniale altamente concorrenziale tra maschi alla ricerca di femmine nubili.
Per quattro decenni, dal 1957 al 1995, Wolf studiò le storie di 14.200 Taiwanesi femmine che erano state contrattate per matrimonio precoce alla fine del ‘800 e inizi del ‘900. La statistica fu integrata con interviste personali con molte di queste “piccole nuore” o “sim-pua”, termine con cui esse sono denominate nella lingua Hokkein, e anche con interviste dei loro amici e parenti. Ciò su cui Wolf richiamò l’attenzione degli studiosi fu un “esperimento controllato” (per cosi dire) sulle origini psicologiche di un pezzo importante del comportamento sociale umano. Le “sim-pua” e i loro mariti non erano biologicamente imparentati, eliminando in questo modo tutti quei possibili fattori di rischio dovuti ad una similarità genetica stretta, anche se essi erano stati cresciuti in una prossimità tanto intima come quella vissuta tra fratelli e sorelle consanguinei nei nuclei familiari taiwanesi30.
Questi risultati, inequivocabilmente, favorivano l’ipotesi di Westermarck. Quando la futura moglie veniva adottata prima dei 30 mesi di età di solito rifiutava il matrimonio col fratello de facto. In tali circostanze i genitori spesso dovevano forzare la coppia a consumare il matrimonio, in alcuni casi arrivando alla minaccia della punizione fisica. Questi matrimoni finivano in “divorzio” tre volte più spesso dei matrimoni fra adulti nella stessa comunità. Questi matrimoni procreavano il 40% di figli in meno rispetto gli altri e un terzo delle donne erano considerate adultere conclamate rispetto a un 10 % riportato negli altri matrimoni31.
Con una serie meticolosa di analisi incrociate, Wolf e i suoi collaboratori identificarono nella stretta convivenza nei primi 30 mesi di vita, di uno o di entrambi i soggetti, il fattore chiave inibitore di un eventuale accoppiamento tra di essi. Più prolungata e vicina la coabitazione durante questo periodo critico, più rimarcato sarebbe l’effetto successivo. Secondo questa interpretazione sarebbero da ridurre o da eliminare altri fattori che avrebbero, presumibilmente, potuto giocare un ruolo in quest’inibizione all’accoppiamento, fra cui l’esperienza stessa della adozione, lo status finanziario della famiglia ospitante, la salute, l’età al momento del matrimonio, la rivalità tra fratelli e/o sorelle e la naturale avversione all’incesto che avrebbe potuto scaturire dal confondere la coppia non consanguinea come un fratello o una sorella legati geneticamente32.
Un simile “esperimento” (involontario) è stato eseguito nell’ambito dei Kibbutz israeliani dove i bambini erano stati cresciuti in cerchie tanto vicine come se fossero fratelli e sorelle in una famiglia convenzionale. L’antropologo Joseph Shepher e i suoi collaboratori hanno riportato nel 1971 che da 2,769 matrimoni tra giovani adulti, che erano stati cresciuti in kibbutz, nessuno dei partner apparteneva allo stesso kibbutz e nessuno dei contraenti matrimonio aveva conosciuto la controparte durante i primi sei anni di vita33.
Da questi studi, e da una quantità di documentazione aneddotica addizionale raccolta in altre società, si può proporre l’ipotesi che il cervello umano sia programmato per eseguire regole semplici del tipo: nel sesso disinteressatevi di quelli che hai frequentato da vicino nei primissimi anni di vita!
Se con la documentazione disponibile in materia, ci si ponesse la domanda se sia probabile che gli umani non siano governati dall’effetto Westermarck ma che siano, invece, semplicemente diretti dalla loro intelligenza e memoria per riconoscere che l’accoppiamento riproduttivo tra fratelli e sorelle e tra genitori e prole crea prole disabile, la risposta sarebbe, semplicemente, “no”34. Quando l’antropologo William H. Durham studiò le credenze di 60 società sparse nel pianeta alla ricerca di referenze su una possibile comprensione razionale delle conseguenze degli accoppiamenti consanguinei stretti, egli trovò che soltanto 20 società avevano un qualche grado di consapevolezza al riguardo35. Ad esempio, i Tlingit, popolo indigeno dell’America del Nord Ovest, capivano in modo elementare che la prole disabile è spesso il risultato dell’accoppiamento riproduttivo tra parenti o, meglio, di consanguinei molto stretti. Altre società che hanno in qualche modo afferrato “razionalmente” il fenomeno, hanno sviluppato dei racconti o teorie demologiche per spiegarlo. I Lapponi della Scandinavia parlavano del Mara, la maledizione generata da una coppia incestuosa e trasmessa alla sua prole. I Kapauku della Nuova Guinea, con una percezione simile, considerano che l’atto dell’incesto è causa di un deterioramento nelle “sostanze vitali”. Il popolo Sulawesi, nell’Indonesia, è stato ancora più cosmico nella sua interpretazione e considera che quando persone con relazioni conflittuali si accoppiano, come nel caso degli accoppiamenti tra consanguinei, la natura precipita nel caos36.
Curiosamente, mentre 55 delle 60 società studiate da Durham avevano motivi riguardo l’incesto in almeno uno o due dei loro miti, solo 5 contenevano racconti riguardo effetti maligni. Escludendo un limitatissimo numero di società che attribuivano risultati benefici alla trasgressione del tipo la creazione di giganti e di eroi, l’incesto era visto, generalmente, come qualcosa di anomalo37.
L’effetto Westermarck, nella prospettiva di Wilson, sarebbe una regola epigenetica della co-evoluzione geni-cultura, nel senso che deriverebbe da una predisposizione [comportamentale] degli individui a scegliere e trasmettere, attraverso la cultura, una fra le molteplici opzioni possibili38. L’equivalente di queste molteplici opzioni nella genetica medica sarebbe rappresentato dai geni di “suscettibilità” (predisposizione) al cancro, all’alcolismo, alla depressione cronica (solo per citarne alcune) e a molte altre. Queste predisposizioni genetiche non vogliono significare che questi soggetti sviluppino sempre la malattia, perché lo fanno solo in concomitanza di alcuni fattori favorevoli (ambientali e non) e, certamente, in misura maggiore dei non portatori. Ad esempio, se si è geneticamente predisposti al mesotelioma e si lavora in una struttura che ha polvere di amianto, si è più a rischio di sviluppare la malattia rispetto ai colleghi che non ne sono, geneticamente, inclini. O, ancora, se si è geneticamente propensi all’alcolismo è più facile diventare alcolista. Le regole epigenetiche di comportamento che influenzano la cultura e che sono spuntate per selezione naturale, agiscono nello stesso modo dei geni di “suscettibilità” (ovvero di predisposizione), ma esse sono la norma e le forti deviazioni rispetto a queste regole sono di solito passibili di essere eliminate dall’evoluzione culturale o genetica o da entrambe. In questa ottica, sia le regole [epigenetiche] della co-evoluzione geni – cultura sia la predisposizione alla malattia genetica sono coerenti con l’ampia definizione di “epigenetica” utilizzata dall’agenzia del Dipartimento della Salute e dei Servizi Umani degli Stati Uniti, attraverso i suoi Istituti Nazionali di Sanità [NIH]. Il termine epigenetica è riferibile ai cambiamenti che influenzano il fenotipo senza alterare il genotipo, ossia è lo studio di tutte le modificazioni ereditabili nella progenie di una linea cellulare di un individuo che ne variano l’espressione genica pur non alterando la sequenza del DNA (del tipo mutazioni congenite)[efn_noteLumsden, Charles J. & Wilson, Edward O. op. cit. 1981.[/efn_note] 39.
La percezione dei colori nel linguaggio
In un campo completamente differente, un secondo caso di co-evoluzione geni-cultura che è ugualmente attentamente documentato dalla ricerca è quello del vocabolario dei colori. La ricerca scientifica ha indagato il lungo spettro della questione, dai geni che prescrivono la percezione del colore fino all’espressione finale della percezione dei colori nel linguaggio.
Il colore40 non esiste in natura o, almeno, non esiste nella sensazione codificata ed immediata di cui possiamo esserne consapevoli. Il colore percepito nell’uomo (e nei primati catarrhini) costituisce una qualità della sensazione visiva costruita dal cervello. La luce41 visibile consiste di lunghezze d’onde continuamente variabili, senza alcun colore intrinseco incorporato. La visione del colore è imposta a questa variazione dalle cellule coniche fotosensibili della retina e dalle cellule nervose connettive del cervello. La visione del colore inizia quando l’energia della luce è assorbita da tre differenti pigmenti nelle cellule coniche42 che i ricercatori hanno etichettato come cellule blu, verdi e rosse in base ai pigmenti fotosensibili che queste cellule contengono. La reazione molecolare innescata dallo spettro visibile è tradotta in segnali elettrici che sono trasmessi alle cellule retiniche gangliari che formano il nervo ottico. Qui l’informazione relativa alla lunghezza d’onda viene ricombinata per produrre dei segnali distribuiti su due assi. Il cervello, poi, interpreta un asse come un spettro che va dal rosso al verde e l’altro asse come un spettro che va dal blu al giallo, con il giallo definito come un mix di verde e rosso. Poiché i segnali dei coni convergono sui neuroni gangliari retinici in modo opponente, una particolare cellula gangliare, ad esempio, può essere eccitata dall’input proveniente dai coni rossi e inibita dall’input provenienti da coni verdi. Dipendendo della forza del segnale elettrico trasmesso, tale forza del segnale comunica al cervello quanto rosso o quanto verde la retina sta ricevendo, formando così risposte selettive per variazioni cromatiche. L’informazione collettiva di questo tipo proveniente da un grande numero di coni e di cellule gangliari mediatrici è ritrasferita nel cervello ai nuclei genicolati laterali del talamo43 (masse di cellule nervose che formano una specie di relè – o staffetta di trasmissione – vicino al centro del cervello) attraverso il chiasma ottico e, infine, inviate a schiere di cellule nella corteccia visiva primaria all’estremità posteriore del cervello.
In una frazione di tempo di millesimi di secondo l’informazione visiva, ora codificata in colore, si propaga alle differenti parti del cervello. La reazione del cervello dipende dall’input di altri tipi di informazione e dai ricordi che suscitano. I modelli invocati da molte combinazioni simili possono, per esempio, spingere una persona a ponderare le parole che specificano i modelli, del tipo: “Questa è la bandiera americana, i suoi colori sono rosso, bianco e blu”. Da tener presente quando si ragiona sull’ovvietà apparente della natura umana che, ad esempio, un insetto percepisce lunghezze d’onda differenti e le scompone in colori diversi o in nessun colore in base al suo apparato visivo e, se in qualche modo potesse esprimersi, ci confermerebbe che i colori della stessa bandiera sono percepiti diversamente. Altro esempio è la formica che percepisce l’ultravioletto e il verde, mentre per noi umani l’ultravioletto non è visibile mentre il rosso sì ma per la formica no. Della chimica dei tre pigmenti nei coni è nota la struttura del DNA dei geni sul cromosoma X che prescrivono gli amminoacidi da cui sono composti e le forme in cui le loro catene sono racchiuse, così come è nota strutturalmente la chimica delle mutazioni nei geni che causano, ad esempio, l’acromatopsia congenita (cecità al colore).
Così, attraverso processi molecolari ereditati o congeniti, ragionevolmente ben compresi dalla ricerca, il sistema sensoriale e il cervello umano organizzano le lunghezze d’onda continuamente variabili della luce visibile nella serie di unità più o meno discrete che noi, umani, chiamiamo “spettro dei colori”. Questa serie è arbitraria in un senso prettamente biologico in quanto essa è solo una delle molte serie che avrebbero potuto evolversi nell’arco di migliaia di millenni. Ma in senso culturale, questa serie non è arbitraria. Essendosi evoluta geneticamente, questa risposta (la serie dei colori percepita dagli umani) non può essere modificata né dall’apprendimento né dal linguaggio. Tutti i tratti della cultura umana che coinvolgono il colore derivano da questo processo unitario. Come fenomeno biologico, la percezione dei colori esiste indipendentemente dalla percezione dell’intensità della luce. Quando noi modifichiamo gradualmente l’intensità della luce visibile, diciamo con l’apertura e chiusura di un regolatore dell’intensità della luce, noi percepiamo il cambiamento di intensità come il continuo processo che realmente è. Ma se noi utilizziamo una luce monocromatica – utilizzando solo una lunghezza d’onda alla volta – e passiamo da una lunghezza d’onda alla seguente in successione, non percepiamo questa continuità. Ciò che vedremmo andando da un estremo con lunghezza d’onda molto corta all’estremo della lunghezza d’onda larga è, per prima cosa, un’ampia striscia blu (almeno una striscia di lunghezza d’onda più o meno percepita come quel colore), poi verde, poi giallo e infine rosso. A questi colori si aggiunge il bianco, prodotto dagli altri colori combinati assieme, e il nero, l’assenza di luce.
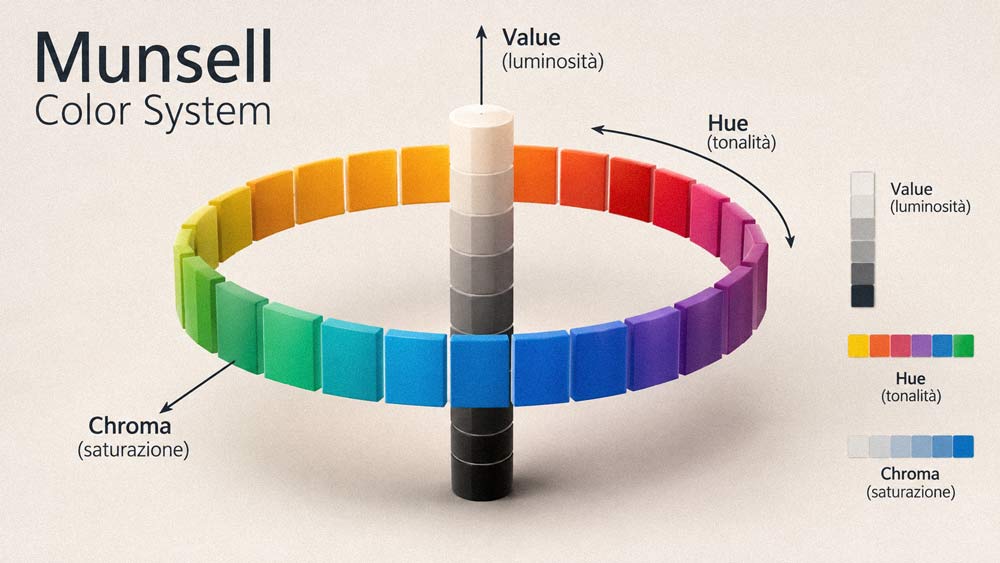
La creazione dei vocabolari dei colori su scala mondiale è condizionata da questo stesso vincolo biologico. In un famoso esperimento condotto negli anni ‘60 del secolo scorso, Brent Berlin & Paul Key hanno testato i concetti cromatici in soggetti lingua madre di 20 idiomi, includendo arabo, bulgaro, cantonese, catalano, ebraico, thai, urdu, ibibio e tzeltal44. Ai partecipanti è stato chiesto di descrivere il loro vocabolario dei colori in una maniera lineare e precisa. Ad essi è stato mostrata una serie Munsell, cioè una varietà di fiches (schede colorate) che variano attraverso lo spettro cromatico da sinistra a destra e che aumentano in luminosità dal basso verso l’alto45 ed è stato chiesto loro di posizionarle ognuna nei principali termini cromatici della loro lingua. Anche se i termini variavano notevolmente da una lingua all’altra, per cultura e tono vocale, ciascun posizionò le fiches in serie che corrispondevano, almeno approssimativamente, ai principali colori: blu, verde, giallo e rosso.
L’esperimento di Berlin & Kay suggerisce che la percezione innata dei colori primari guida l’evoluzione dei vocabolari dei colori: i madre-lingua concentravano i loro termini dove la percezione del colore è più stabile riguardo ai cambiamenti della frequenza luminosa.
L’intensità del vincolo di apprendimento è stata sorprendentemente rivelata da un esperimento condotto sulla percezione del colore alla fine del 1960 da Eleanor Rosch46. In cerca di “categorie naturali” di cognizione, la Rosch sfruttò il fatto che il popolo Dani della Nuova Guinea non ha parole per indicare i colori ma utilizza i termini mili (all’incirca “oscuro”) e mola (“luce”). La Rosch considerò la seguente domanda: se gli adulti Dani cercassero di imparare un vocabolario dei colori, sarebbero facilitati se i termini cromatici corrispondessero ai principali colori innati? In altre parole, sarebbe l’innovazione culturale incanalata in una certa misura dai vincoli genetici? La Rosch divise 68 partecipanti (uomini Dani) in due gruppi, insegnò ad un gruppo una serie di termini riguardo i colori basati sulle principali categorie cromatiche (blu, verde, giallo e rosso), identificabili nella maggior parte dei vocabolari naturali di altre culture, poi insegnò al secondo gruppo una serie di termini nuovi collocati non centrati sulle principali definizioni cromatiche delle altre lingue. Il primo gruppo, seguendo le “naturali” propensioni riguardo la percezione dei colori, imparò la lezione circa due volte più rapidamente rispetto coloro a cui si cercava di insegnare i termini cromatici “meno naturali” e, quindi, più impegnativi, ma che potendo scegliere, preferivano i termini cromatici naturali.
Per completare il passaggio dai geni alla cultura, come hanno suggerito Wilson & Lumsden47, data la base genetica della visione dei colori e il suo effetto generale sul vocabolario dei colori, ci chiediamo quanto grande è stata la disseminazione dei tratti nelle diverse culture? Wilson suggerisce che al riguardo abbiamo almeno una risposta parziale48. Nel caso dell’Effetto di Westermarck e del tabù dell’incesto che ne consegue, tutte le società sono quasi completamente coerenti [d’accordo]. Tuttavia, i vocabolari dei colori sono molto diversi in proposito. Poche società sono relativamente indifferenti alla questione del colore e si accontentano con una classificazione rudimentale. Altre fanno distinzioni molto sottili riguardo tonalità e intensità in ogni colore primario.
Seguendo il ragionamento di Wilson49, dunque, un altro modo di indagare la questione è quello di chiedersi se la disseminazione dei termini cromatici sia stata casuale. La documentazione al riguardo suggerisce che evidentemente non è stata casuale. Infatti, in indagini successive condotte da Kay50 è stato documentato che ogni società utilizza da due ad undici termini cromatici fondamentali, che sono punti focali distribuiti lungo i quattro blocchi elementari di colori nella serie Munsell. La serie completa, usando i termini italiani, è: nero, bianco, rosso, giallo, verde, blu, marrone, viola, rosa, arancione e grigio. Da una cultura all’altra ognuno può essere omologato con un termine cromatico scelto fra gli undici o una qualche combinazione di termini. Per esempio, quando diciamo “rosa”, in un’altra lingua può esserci un termine equivalente o un termine che per noi significa “rosa” e/o “arancione”. La lingua dei Dani usa soltanto due termini, l’italiano come l’inglese, utilizza tutti e undici. Passando dalle società con classificazioni semplici a quelle con classificazioni complesse, le combinazioni dei termini cromatici fondamentali come regola crescono secondo la gerarchia che segue:
• Le lingue con soltanto due termini cromatici basici li utilizzano per distinguere bianco e nero.
• Le lingue con solo tre termini cromatici hanno vocaboli per nero, bianco e rosso.
• Le lingue con soltanto quattro termini cromatici hanno vocaboli per nero, bianco, rosso, verde o giallo.
• Le lingue con cinque termini cromatici hanno vocaboli per nero, bianco, rosso, verde e giallo.
• Le lingue con sei termini cromatici hanno vocaboli per nero, bianco, rosso, verde, giallo e blu.
• Le lingue con sette termini cromatici hanno vocaboli per nero, bianco, rosso, verde, giallo, blu e marrone.
• Non esiste una simile successione fra i quattro altri colori basici (viola, rosa, arancione e grigio), quando questi sono stati aggiunti dopo i primi sette.
Ciò che la ricerca suggerisce è che se i termini cromatici fondamentali fossero combinati a caso, i vocabolari umani dei colori sarebbero ricavati alla rinfusa da 2036 sequenze matematicamente possibili. La progressione studiata da Berlin & Kay suggerisce che in gran parte sono ricavati soltanto da ventidue51 52
Nuove ricerche hanno confermato la “realtà” degli undici termini cromatici fondamentali, tanto che quelli di una lingua possono essere abbinati con quelli di altre: ciascuno ad uno, molti ad uno, uno a molti. Tuttavia, il posto preciso dove i termini vengono collocati, in ognuno dei colori fondamentali, è diverso da una lingua all’altra. Il posizionamento sembra dipendere dall’importanza del colore nel punto dell’area fondamentale dove è collocato, e dipende, anche, dalla precisione con cui la posizione distingue il colore fondamentale da quello successivo53 54
Un interrogativo fondamentale circa la co-evoluzione geni-cultura posto dalla relazione fra categorie cromatiche e linguaggio è il grado di influenza reciproca55. Un’ipotesi valida formulata negli anni ’30 del secolo scorso da Benjamin Lee Whorf56 è che il linguaggio non serva soltanto a comunicare quello che percepiamo nel resto del mondo, ma influenza anche quello che definitivamente percepiamo. Nel caso dei vocabolari dei colori, le ricerche finora condotte hanno di fatto accreditato un’ipotesi intermedia: il cervello filtra e distorce i colori in diversi modi, ma non ne determina da solo le categorie57.
Documentazione diretta circa la relazione tra il colore e la lingua parlata è stata acquisita recentemente grazie agli studi con la risonanza magnetica per immagini (MRI) dell’attività cerebrale58. La percezione delle categorie cromatiche è più strettamente correlata al campo visivo destro del cervello. Quando a dei soggetti furono mostrate varie sequenze di categorie cromatiche, il loro schema di attività cerebrale risultò ovviamente più forte nel campo visivo destro per i colori di differenti categorie cromatiche piuttosto che per la stessa categoria cromatica. Ma differenti categorie cromatiche provocarono anche un’attivazione più forte nella regione del linguaggio nell’emisfero sinistro. Questo risultato indica che la regione del linguaggio fornisce una certa quantità di controllo dall’alto verso il basso dell’attività nella corteccia visiva59.
Dal canto loro, i biologi evoluzionisti hanno iniziato a porsi la domanda del perché le culture umane in genere scelgano una particolare sequenza di categorie cromatiche quando aggiungono dei vocaboli al loro repertorio linguistico. L’ipotesi più accreditata è il dominio del rosso che fa la sua apparizione all’inizio della sequenza cromatica percepita evoluzionisticamente. Una spiegazione plausibile, secondo André A. Fernandez e Molly R. Morris60André A. Fernandez & Molly R. Morris. Sexual selection and trichromatic color vision in primates: Statistical support for the preexisting-bias hypothesis. In “American Naturalist”, Vol. 170(1), pp. 10-20, 2007.[/en_note], è che il rosso e l’arancione sono i colori caratteristici della frutta. I primi primati arboricoli si sarebbero avvantaggiati puntando verso questi colori in mezzo a un ambiente quasi completamente marrone e verde. Secondo questa ipotesi, quando diventarono sociali, alcune specie scelsero questi colori per segnalare la loro disponibilità sessuale. Nella teoria generale dell’istinto, ad esempio, le tonalità di rosso e rossiccio furono “ritualizzate” nei primati ancestrali del Vecchio Mondo per essere utilizzati nella comunicazione visiva.
I nostri sistemi comportamentali
Così, attraverso processi molecolari, ragionevolmente documentati dalla ricerca, il sistema sensoriale e il cervello umano organizzano i nostri sistemi comportamentali, casuali in un senso prettamente biologico in quanto essi sono solo alcuni dei molti modelli in cui avrebbero potuto evolversi nell’arco di migliaia di millenni, ma in senso culturale questi sistemi comportamentali non risultano casuali essendosi evoluti in co-evoluzione con i geni. Ossia il nostro comportamento è legato alle regole epigenetiche. In questa prospettiva, tutti i tratti della cultura umana deriverebbero da questo processo unitario di co-evoluzione.
Da questa prospettiva, ciò che possiamo chiamare “natura umana” è costituita da queste “regole epigenetiche” o regolarità ereditarie dello sviluppo mentale comune alla nostra specie, le quali si sono evolute mediante l’interazione dell’evoluzione genetica e culturale, interazione che ha richiesto un lunghissimo periodo della nostra storia ancestrale. Queste regole sono le predisposizioni genetiche nel modo in cui i nostri sensi percepiscono il mondo circostante, il codice simbolico con cui rappresentiamo il mondo, le opzioni che noi, umani, riserviamo, automaticamente, a noi stessi e le risposte che troviamo più facili e premianti da attuare. Infine, queste sono le regole di sviluppo emerse in co-evoluzione con i geni, attraverso cui gli universali della cultura si realizzano.
L’incognita esistenza
In effetti, le questioni che si cerca di divulgare con questo progetto editoriale, volte alla comprensione della condizione umana, hanno come destinatari tutti quelli che cercano un dialogo di riflessione sulle eterne domande cruciali dell’esistenza umana. Da dove veniamo? Chi siamo? Dove andiamo? … Questioni che cercano di smantellare ogni prevaricazione nell’interpretazione sociale del chi siamo, prevaricazioni che non possono che condurre ad una ulteriore prevaricazione in ogni futurologia che ci viene predicata circa il nostro domani.
Al riguardo, questo progetto editoriale dà spazio ad un’ottica che ritiene che la risposta alle domande esistenziali deve venire si dalla storia ma la storia tradizionale da sola è incompleta sia nella cronologia sia nella percezione dell’organismo umano: la storia non ha senso senza la preistoria e la preistoria senza la biologia nella sua continua evoluzione. E questo è esattamente il punto di partenza: l’umanità è una specie biologica in un mondo biologico in divenire. Apparteniamo alla biosfera dalla nostra nascita e, pur essendo stati in vari modi magnificati, mistificati o oppressi, restiamo una specie animale della fauna globale. In ogni funzione del nostro corpo e della nostra mente e ad ogni livello, siamo adattati a vivere su questo pianeta avvalendoci di una costruzione emersa in co-evoluzione con i geni: la cultura.
- Tra questi si possono annoverare i 67 comportamenti sociali e istituzionali condivisi da centinaia di società compilati da George P. Murdock elencati qui in ordine sparso: classi di età, sport, ornamenti del corpo, calendario, igiene personale, organizzazione comunitaria, cucina, lavoro di squadra, cosmologia, corteggiamento, ballo, arte decorativa, divinazione, divisione del lavoro, interpretazione dei sogni, istruzione, escatologia, etica, etno-botanica, galateo, guarigioni miracolose, festeggiamenti in famiglia, utensili per l’accensione del fuoco, folclore, tabù alimentari, cerimonie funebri, giochi, gestualità, scambio di doni, governo, saluti e auguri, acconciature, ospitalità, edilizia, igiene, tabù dell’incesto, diritto ereditario, scherzi e barzellette, gruppi di parenti, nomenclatura parentale, lingua diritto, superstizioni, magia, matrimonio, orari dei paesi, medicina, ostetricia, sistema penale, nomi e cognomi, politica demografica, cure postnatali, usanze di gravidanza, diritti di proprietà, sacrifici a esseri sopranaturali, riti di iniziazione, rituali religiosi, regole residenziali, divieti sessuali, concetti di anima, differenziazione di status, chirurgia, industria, commercio, visite di cortesia, meteorologia, tessitura.
- Sarebbe prematuro aspettarci che ciascuno di questi universali teoretici siano esclusivamente di natura genetica. In ogni caso, gli universali umani possono essere ritenuti come probabili prodotti di qualcosa di più complesso.
- Wilson, Edward O. The Social Conquest of Earth. Liveright Publishing Corporation, N.Y. 2012.
- Ibidem p. 193.
- Ibidem
- Ibidem
- Ibidem p. 194.
- Ibidem
- Ibidem p. 194-195.
- Lumsden, Charles J. & Wilson, Edward O. Genes, Mind, And Culture: the coevolutionary process, Harvard University Press, 1981.
- Ibidem
- La nozione della co-evoluzione geni-cultura si ritrova espressa anche nell’ipotesi dell’ereditarietà duale, (Dual inheritance theory) che propone che i moderni esseri umani siano i risultanti dell’interazione tra evoluzione biologica e l’evoluzione culturale. Questa ipotesi, come sviluppata da Richerson & Boyd, presuppone che la cultura, (compresa la trasmissione culturale e l’evoluzione culturale), sia influenzata e vincolata dalle potenzialità di evoluzione del genoma, e che a sua volta contribuisca ad apportare pressioni selettive sul genoma. I risultati di tali interazioni possono dare frutto a processi di adattamento all’interno di una popolazione. Richerson, Peter J. & Boyd, Robert, Not By Genes Alone: How Culture Transformed Human Evolution. University of Chicago Press, Chicago, 2005.
- Cavalli Sforza & Feldman formularono una teoria matematica relativa alla diffusione dei tratti culturali. Cavalli-Sforza, L., P. Menozzi and A. Piazza. The history and geography of human genes. Princeton University Press, Princeton, 1994.
- Questa unilateralità che favoriva il peso della cultura nell’evoluzione umana è curiosa date le sostanziali evidenze disponibili già all’epoca (anni 70) delle proprietà genetiche considerate come facenti parte della “natura umana”, con tangibili influenze su alcuni aspetti dell’evoluzione culturale. Tale parzialità può essere interpretata come un’enfasi volta a contrastare la visione riguardo la mente come una “tabula rasa” che, all’epoca, negava interamente l’esistenza di una natura umana. Secondo questo punto di vista, senza dimensione biologica dell’evoluzione umana, la cultura umana si sarebbe evoluta durante un lasso di tempo molto breve perché l’evoluzione genetica potesse manifestarsi.
- Sara A Tishkoff et al. Convergent adaptation of human lactose persistence in Africa and Europe. In “Nature Genetics”, vol. 39, Issue 1, pp. 31-40, 2007.
- Costruzione nicchia è il processo in cui un organismo altera il proprio ambiente (a volte l’ambienti di altri), spesso, ma non sempre, in modo che aumenta le sue possibilità di sopravvivenza. I cambiamenti che gli organismi determinano nei loro mondi che non sono di alcuna conseguenza evolutiva o ecologica non sono esempi di costruzione di nicchia. Molti biologi hanno sostenuto che la costruzione di nicchia è tanto importante per l’evoluzione quanto la selezione naturale, vale a dire non solo l’ambiente causa cambiamenti attraverso la selezione, ma anche le specie causanao cambiamenti nei loro ambienti attraverso la costruzione di nicchia. Questo avanti e indietro crea un rapporto di feedback tra la selezione naturale e la costruzione di nicchia: quando gli organismi influenzano il loro ambiente, questo cambiamento può causare uno spostamento in quali tratti sono stati naturalmente selezionati. L’effetto di costruzione nicchia è particolarmente pronunciato nelle situazioni in cui le alterazioni ambientali persistono per più generazioni, introducendo il ruolo evolutivo di eredità ecologica.. Questa teoria, in collaborazione con la selezione naturale, dimostra che gli organismi ereditano due lasciti dai loro antenati: geni e un ambiente modificato. Insieme, questi due meccanismi evolutivi determinano la fitness di una popolazione e quali adattamenti quegli organismi sviluppano in continuazione per la loro sopravvivenza.
- Olli Arjama & Tima Vuoriselo, Gene-culture coevolution and human diet. In “American Scientist”, vol. 98, pp. 140-146, 2010.
- Richard Wrangham. Catching Fire: How Cooking Made Us Human. Basic Books, New York, 2009.
- Wilson E. O. op. cit. pp. 198-199.
- Edward O. Wilson. Consilience: The Unity of Knowledge. Knopf, New York, 1998.
- Jennifer Couzain & Joselyn Kaiser. Closing the net on common disease genes. In “Science”, vol. 316, pp. 820-822, 2007.
- La depressione endogamica è la perdita di adattabilità prodotta dalla perdita di variazione genetica dovuta all’omozigosi che impedisce la sopravvivenza della specie, permettendo l’espressioni di alleli recessivi dannosi provenenti da entrambi i progenitori che, di solito, si produce a seguito dell’incrocio genetico tra parenti prossimi o consanguinei.
- Ken N. Paige. The functional genomics of inbreeding depression: A new approach to an old problem. In “BioScience”, vol. 60. Pp. 267-277, 2010.
- Ibidem
- Chapai, Bernard. Primeval Kinship: How Pair-Bonding Gave Rise to Human Society. Harvard University Press, Cambridge, 2008.
- Wilson, E. O. op. cit. 2012.
- Chapais, Bernard. op. cit. 2008.
- Edward A. Westermarck. The History of Human Marriage. Hard Press Editions, Stockbridge, MA, 2012.
- Arthur P. Wolf. Sexual Attraction and Childhood Association: A Chinese Brief for Edward Westermarck. Stanford University Press, Stanford, 1995.
- Ibidem
- Ibidem
- Ibidem
- Joseph Shepher. Mate selection among second generation kibbutz adolescents and adults: Incest avoidance and negative imprinting. In “Archives of Sexual Behaviors”, Vol. 1, Issue 4, pp. 293-307, 1971
- Wilson, E. O. op. cit. 2012 p. 203
- William H. Durham. Coevolutin: Genes, Culture, and Human Diversity. Stanford University Press, Stanford, 1991.
- Ibidem
- Ibidem
- Wilson, E. O. op. cit. 2012 p.203.
- Tabitha M. Powledge, Epigenetics and development. Understanding how epigenetics works at the molecular level can be mind-boggling. In “BioScience”, vol. 59, Issue 9, pp. 736-741, 2009.
- Il colore è la percezione visiva generata dai segnali nervosi che i fotorecettori della retina inviano al cervello quando assorbono le radiazioni elettromagnetiche di determinate lunghezze d’onda e intensità nel cosiddetto spettro visibile o luce.
- Porzione dello spettro elettromagnetico visibile dall’occhio umano, approssimativamente compresa tra 400 e 700 nanometri di lunghezza d’onda.. Sebbene nell’elettromagnetismo classico la luce sia descritta come un’onda, l’avvento della meccanica quantistica agli inizi del XX secolo ha permesso di capire che questa possiede anche proprietà tipiche delle particelle e di spiegare fenomeni come l’effetto fotoelettrico. Nella fisica moderna la luce (e tutta la radiazione elettromagnetica) viene composta da unità fondamentali, o quanti, di campo elettromagnetico chiamati fotoni.
- I coni e i bastoncelli sono le cellule recettoriali responsabili di trasformare l’energia luminosa in potenziale elettrico. I coni (detti anche L, M e S perché hanno picchi di assorbimento a lunghezze d’onda lunghe (580 nm), medie (540 nm) e corte (430 nm), hanno spettri di assorbimento molto ampi in sovrapposizione fra loro: non esiste infatti una luce di lunghezza d’onda che riesca a eccitare solo uno dei tre coni. In effetti, la nostra percezione del colore nasce dal paragone delle attività relative dei tre coni, che generano la stessa risposta con un’infinità di combinazioni di spettri luminosi.
- Il nucleo o corpo genicolato laterale (NGL) del talamo è una parte del cervello preposta al trattamento dell’informazione visiva proveniente dalla retina.
- Brent Berlin & Paul Kay. Basic Color Terms: Their Universality and Evolution. University of California Press, Berkeley, 1969.
- Ciò che è stato mostrato era un Sistema Munsell dei colori, cioè quello spazio dei colori usato come standard internazionale per definire i colori in base a tre coordinate dimensionali: tonalità, luminosità e saturazione.
- Eleonor Rosch, Carolyn Mervis and Wayne Gray. Basic Objects in Natural Categories. University of California, Language Behavior Research Laboratory, Working Paper no. 43, Berkeley, 1975.
- Charles J. Lumsden and Edward O. Wilson. Translation of epigenetic rules of individual behavior into ethnographic patterns. In “Proceeding of the National Academy of Sciences, USA.” Vol. 77(7) pp. 6248-6250, 1980.
- Wilson, Edward O. The Social Conquest of Earth. Liveright Publishing Corporation, N.Y. 2012 p. 209.
- Edward O. Wilson. Consilience: The Unity of Knowledge. Knopf, New York, 1998.
- Paul Kay & Terry Regier. Language, thought and color: Recent Developments. In “Trends in Cognitive Sciences”, Vol. 10, pp. 53-54, 2006.
- Wilson, Edward O. The Social Conquest of Earth. Liveright Publishing Corporation, N.Y. 2012 p. 210.
- Brent Berlin & Paul Kay. Basic Color Terms: Their Universality and Evolution. University of California Press, Berkeley, 1969.
- Ibidem, p. 210-211.
- Terry Regier, Paul Kay & Naveen Khetarpal. Color naming reflects optional partitions of color space. In “Proceeding of the National Academy of Sciences”, USA, Vol. 104(4) pp. 1436-1441, 2007.
- Philip E. Ross. Draining the language out of color. In “Scientific American”, pp. 46-47, April 2004.
- In linguistica, l’ipotesi di Sapir-Whorf (o Sapir-Whorf Hypothesis), altresì conosciuta come “ipotesi della relatività linguistica”, afferma che lo sviluppo cognitivo di ciascun essere umano è influenzato dalla lingua che parla. Nella sua forma più estrema, questa ipotesi assume che il modo di esprimersi determini il modo di pensare. L’ipotesi prende il nome del linguista e antropologo Edward Sapir (1884-1939) e del suo allievo Benjamin Lee Whorf (1897-1941).
- Terry Regier, Paul Kay & Naveen Khetarpal. Color naming reflects optional partitions of color space. In “Proceeding of the National Academy of Sciences”, USA, Vol. 104(4) pp. 1436-1441, 2007.
- Franklin et al. Lateralization of categorical perception of color changes with color term acquisition. In “Proceeding of the National Academy of Sciences”, USA, Vol. 105(47), pp. 18221-18225, 2008.
- Wai Ting Siok et al. Language regions of brain are operative in color perception. In “Proceeding of the National Academy of Sciences”, USA, Vol. 106(20) pp. 8140-8145, 2009.